Vědci se od pradávna snaží zjistit, jak mozek vytváří vzpomínky, sny, pocity či projevy chování. Ve 20. století se podařilo rozklíčovat, které oblasti mozku řídí různé fyziologické funkce. Stále se zlepšující klasické elektrofyziologické, farmakologické či zobrazovací techniky ani výzkum pacientů s mozkovými lézemi však neposkytly dostatečnou přesnost nutnou pro ovlivnění a zkoumání specifických buněk. Pro přesun neurovědy od observační disciplíny k odvětví založenému na experimentálních intervencích bylo nutné vyvinout techniku pro kontrolu nervové aktivity, jež by byla zároveň cílená, geneticky selektivní a fungovala na milisekundové škále odpovídající vedení nervových vzruchů.1
Právě takovou technikou je optogenetika, jejíž vývoj stojí na desetiletích základního výzkumu a technologického rozvoje. Prvotní ideu o využití světla jako vypínače nervové aktivity vyslovil průkopník genetiky Francis Crick už v roce 1979. Jemu samému se ale v té době jevila „poněkud přitažená za vlasy“.2 Cesta k technologii prakticky využitelné v živoucím mozku začala v 90. letech 20. století na Ústavu Maxe Plancka pro biochemii v Martinsriedu, kde Peter Hegemann zkoumal jednobuněčné zelené řasy pláštěnky (Chlamydomonas).
Pláštěnky jsou vybavené 2 bičíky a světločivným orgánem, jenž jim umožňuje fototaxi, tedy pohyb směrem ke zdroji světla. Hegemann zkoumal signalizaci světločivného orgánu pomocí speciálních mikroelektrod a zjistil, že reakce řas na světlo je neuvěřitelně rychlá. Elektrický proud bylo možné detekovat už asi za půl milisekundy po světelném pulzu. Pro srovnání − na lidské sítnici probíhá komplexní chemická kaskáda spouštěná světlem, jež nakonec aktivuje iontový kanál zrakového nervu, přibližně 10 milisekund. Hegemann přišel s hypotézou, že iontový kanál i přepínač zachycující světlo jsou u pláštěnek součástí jediného proteinového komplexu, což by mohlo vysvětlit 20násobné zrychlení celého procesu.3 Izolace tohoto komplexu se však ukázala jako velmi složitá a dlouho se nedařilo funkční protein připravit.
Na přelomu milénia však byla publikovaná rozsáhlá sekvence genomu pláštěnek4 a Hegemannova skupina identifikovala 2 potenciální kandidáty s homologií ke známým opsinům. Funkční průlom přišel po navázání spolupráce s biofyzikem z Ústavu Maxe Plancka ve Frankfurtu Georgem Nagelem, kterému se podařilo oba proteiny připravit v žabích oocytech. Nově objevené membránové proteiny − channelrhodopsiny (ChR) 1 a 2 − opravdu fungovaly jako iontové kanály, které se otevírají po expozici světlu.5, 6
Podrobnější výzkum ChR2 ukázal, že iontový kanál se otevírá asi 0,2 ms po vystavení pulzu modrého světla, čímž vytvoří elektrický signál zprostředkovaný tokem kationtů po elektrochemickém gradientu. Protein se podařilo připravit i na membráně lidských embryonálních renálních buněk. Hegemann s Nagelem tento objev publikovali v roce 2003 a navrhli, že ChR2 by mohl sloužit jako účinný nástroj k vyvolávání elektrických impulzů v živých buňkách pomocí světla.6
Optogenetickou štafetu poté převzal mladý vědec ze Stanfordovy univerzity Karl Deisseroth, jehož cílem bylo najít protein schopný spouštět elektrické signály v nervových buňkách. Deisserothovi se podařilo zavést DNA kódující ChR2 do buněčné kultury neuronů krysího hipokampu. Buňky světlocitlivý protein bez problémů tvořily. Po expozici modrému světlu se neurony zapínaly a signál se šířil kulturou.7
Karl Deisseroth následně navázal spolupráci s řadou laboratoří. Optogenetika dostala své pojmenování v roce 2006 a rychle se rozvíjela. Byla popsána řada proteinů schopných aktivovat se světlem o různých vlnových délkách. Deisserothovi se zanedlouho podařilo aktivovat ChR2 přímo v neuronech motorické kůry živých myší pomocí tenkého optického vlákna procházejícího miniaturním otvorem v lebce. Vědci tak byli schopni ovládat pohyb myších vousků.8 Následovaly složitější pokusy s myším modelem – aktivace centra bdělosti9 či vyvolání specifické vzpomínky na podnět budící strach.10
Díky optogenetice nyní vědci mohou přesně zjistit, které z nervových buněk ve složitém svazku řídí různé mozkové funkce. Identifikovali například nervové obvody pro vnímání bolesti, sociální chování, žízeň, příjem potravy, odměnu a pozornost. Popsali také neurony zodpovědné za nejrůznější funkce, od regulace cirkadiánního rytmu až po vyvolání horečky při aktivaci imunitního systému. Optogenetika navíc umožnila lépe porozumět charakteristickým rysům psychiatrických a neurologických poruch, jako jsou deprese, úzkost, schizofrenie, Alzheimerova či Parkinsonova choroba.1
V současnosti probíhají prvotní studie, které by mohly optogenetiku zavést do klinické praxe. Zkoumají se například možnosti zlepšení funkce kochleárních implantátů díky přesnějšímu cílení na sluchový nerv, než jaké umožňuje běžná elektrostimulace. Nadějně se jeví experimenty s obnovou zraku u slepoty způsobené progresivní ztrátou fotoreceptorů při retinitis pigmentosa. Zavedení ChR2 do přežívajících neuronů retiny a jejich následné vystavení pulzům světla pomocí speciálních brýlí vedlo u pacienta s tímto onemocněním k přetrvávajícímu částečnému návratu zraku.11
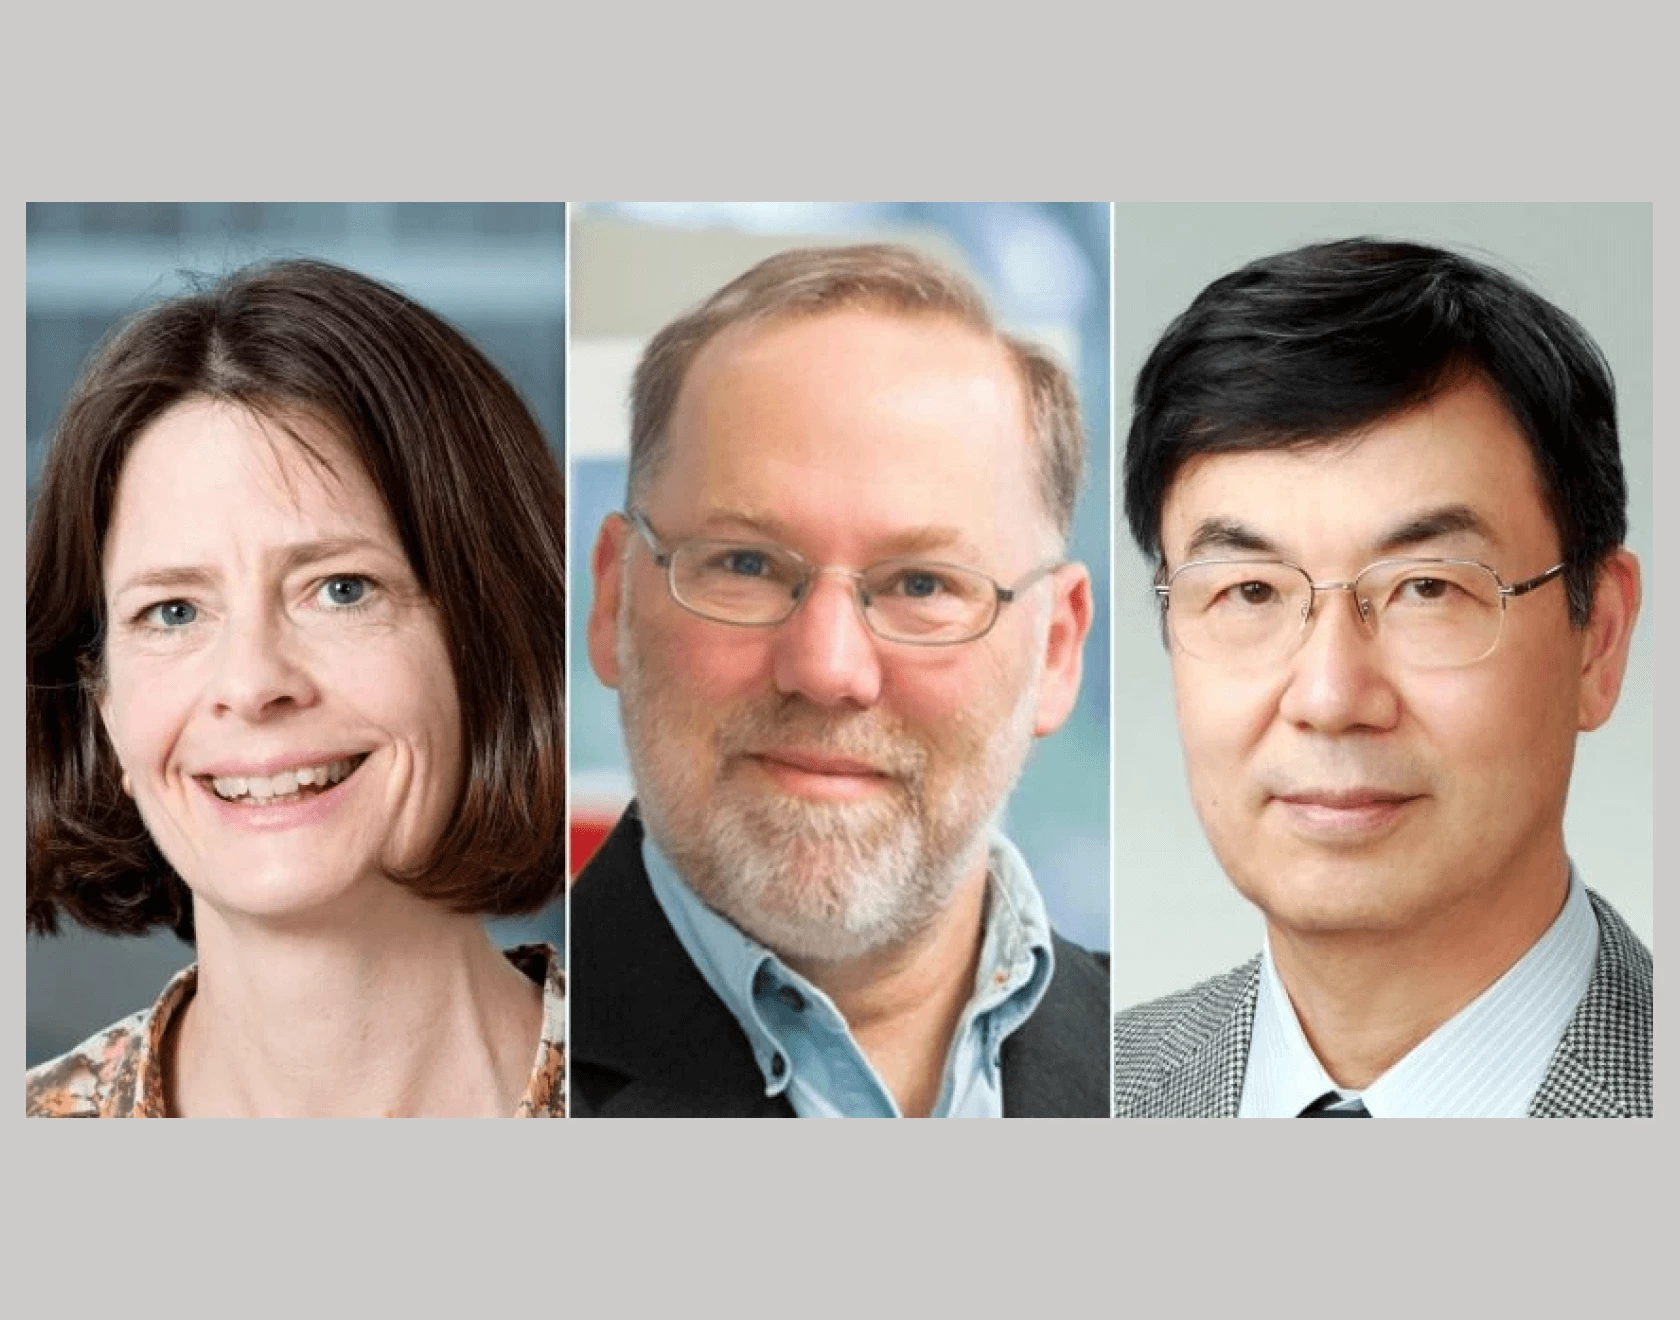
Karl Deisseroth, Peter Hegemann a Georg Nagel získali letošní Nobelovu cenu za objevy, které umožnily vytvoření velmi účinného nástroje, jenž zásadně změnil obor neurovědy. Optogenetika i nadále odhaluje jedno z největších tajemství lidstva − jak funguje mozek.1
(este)
Zdroje:
1. The Nobel Prize in Physiology or Medicine 2026. Nobel Prize Outreach, 2026 Oct 6. Dostupné na: www.nobelprize.org/prizes/medicine/2026/summary
2. Crick F. H. Thinking about the brain. Sci Am 1979; 241 (3): 219–232, doi: 10.1038/scientificamerican0979-219.
3. Harz H., Hegemann P. Rhodopsin-regulated calcium currents in Chlamydomonas. Nature 1991; 351 : 489–491, doi: 10.1038/351489a0.
4. Asamizu E., Miura K., Kucho K. et al. Generation of expressed sequence tags from low-CO₂ and high-CO₂ adapted cells of Chlamydomonas reinhardtii. DNA Res 2000; 7 (5): 305–307, doi: 10.1093/dnares/7.5.305.
5. Nagel G., Ollig D., Fuhrmann M. et al. Channelrhodopsin-1: a light-gated proton channel in green algae. Science 2002; 296 (5577): 2395–2398, doi: 10.1126/science.1072068.
6. Nagel G., Szellas T., Huhn W. et al. Channelrhodopsin-2, a directly light-gated cation-selective membrane channel. Proc Natl Acad Sci U S A 2003; 100 (24): 13940–13945, doi: 10.1073/pnas.1936192100.
7. Boyden E. S., Zhang F., Bamberg E. et al. Millisecond-timescale, genetically targeted optical control of neural activity. Nat Neurosci 2005; 8 (9): 1263–1268, doi: 10.1038/nn1525.
8. Aravanis A. M., Wang L. P., Zhang F. et al. An optical neural interface: in vivo control of rodent motor cortex with integrated fiberoptic and optogenetic technology. J Neural Eng 2007; 4 (3): S143–S156, doi: 10.1088/1741-2560/4/3/S02.
9. Adamantidis A. R., Zhang F., Aravanis A. M. et al. Neural substrates of awakening probed with optogenetic control of hypocretin neurons. Nature 2007; 450 (7168): 420–424, doi: 10.1038/nature06310.
10. Liu X., Ramirez S., Pang P. T. et al. Optogenetic stimulation of a hippocampal engram activates fear memory recall. Nature 2012; 484 (7394): 381–385, doi: 10.1038/nature11028.
11. Sahel J. A., Boulanger-Scemama E., Pagot C. et al. Partial recovery of visual function in a blind patient after optogenetic therapy. Nat Med 2021; 27 (7): 1223–1229, doi: 10.1038/s41591-021-01351-4.